
导读
皮肤是人体抵御外界病原体和环境刺激的第一道防线。角质形成细胞在感知外部威胁后,会启动并协调免疫防御。皮肤损伤会触发损伤相关分子模式(DAMPs)的释放,进而塑造免疫应答。一个核心问题始终悬而未决:局部感染或疫苗接种过程中产生的DAMPs,如何从机制上连接到系统性体液免疫?
代谢中间产物近年来被归为一类DAMPs,催生了“代谢相关分子模式”(MAMPs)的概念。甲羟戊酸(MVA)通路的代谢中间产物——类异戊二烯,是MAMPs的新兴成员。法尼基焦磷酸(FPP)是MVA通路的一个分子节点,是多个下游分支的前体。FPP在阿尔茨海默病和炎症性疾病患者中均有积累报道。
2026年3月,清华大学刘万里团队联合中国医学科学院皮肤病医院陆前进教授团队等在Nature 发表题为 “A metabolic alarmin from keratinocytes potentiates systemic humoral immunity ”的研究。该研究发现:甲羟戊酸通路来源的法尼基焦磷酸(FPP)是一种内源性代谢警报素,通过角质形成细胞来源的IL-6和CCL20增强IgG抗体应答。FPP在感染或紫外线照射后通过UPR-SREBF通路激活MVA通路而在角质形成细胞内积累。机制上,FPP结合TRPV3的胞内结构域(关键残基Arg416和Lys581),诱导Ca²⁺内流,激活CaM-钙调磷酸酶-NFAT和PYK2-RAS-ERK通路,促进IL-6和CCL20产生,进而增强Tfh细胞分化和生发中心反应。该信号轴在SLE皮肤病变中过度激活,促进疾病进展。该研究首次将角质形成细胞的代谢状态与系统性体液免疫直接联系起来,为疫苗佐剂开发和自身免疫病治疗提供了新靶点。
研究结果
▊▏01.FPP增强抗原特异性IgG抗体应答
研究团队首先用铜绿假单胞菌、金黄色葡萄球菌或化脓性链球菌感染小鼠皮肤,通过UPLC-MS/MS检测发现MVA通路代谢物(IPP、DMAPP、GPP、FPP、GGPP)在感染后均升高4-10倍,而细菌本身不产生这些代谢物。
随后,团队合成了这五种代谢物,并与T细胞依赖性抗原(NP-KLH或OVA)通过皮内共免疫。结果显示:只有FPP显著增强抗原特异性IgG抗体的滴度、浓度和亲和力。GGPP有微弱效果,IPP、DMAPP和GPP无效。FPP的作用呈剂量依赖性(150-600 μg),主要增强IgG1(约9倍)和IgG2b(约4倍)亚型,提示其通过Tfh-GC轴发挥作用。FPP促进引流淋巴结(dLNs)扩增约5倍,Tfh和GC B细胞分化增强约2倍,而对Th1、Th2、Th17和CD8⁺T细胞影响较弱。FPP的增强效应仅局限于引流淋巴结,远端脾脏无变化。FPP与T细胞非依赖性抗原NP-Ficoll共免疫不增强抗体应答。初次免疫后第72天抗原回忆实验显示,FPP组的NP特异性IgG持续高于对照组,记忆B细胞和骨髓浆细胞均显著增加。
小结:FPP是MVA通路代谢物中唯一能增强T细胞依赖性抗体应答的分子,通过Tfh-GC轴发挥作用,且效应局限于引流淋巴结、具有免疫记忆增强功能。
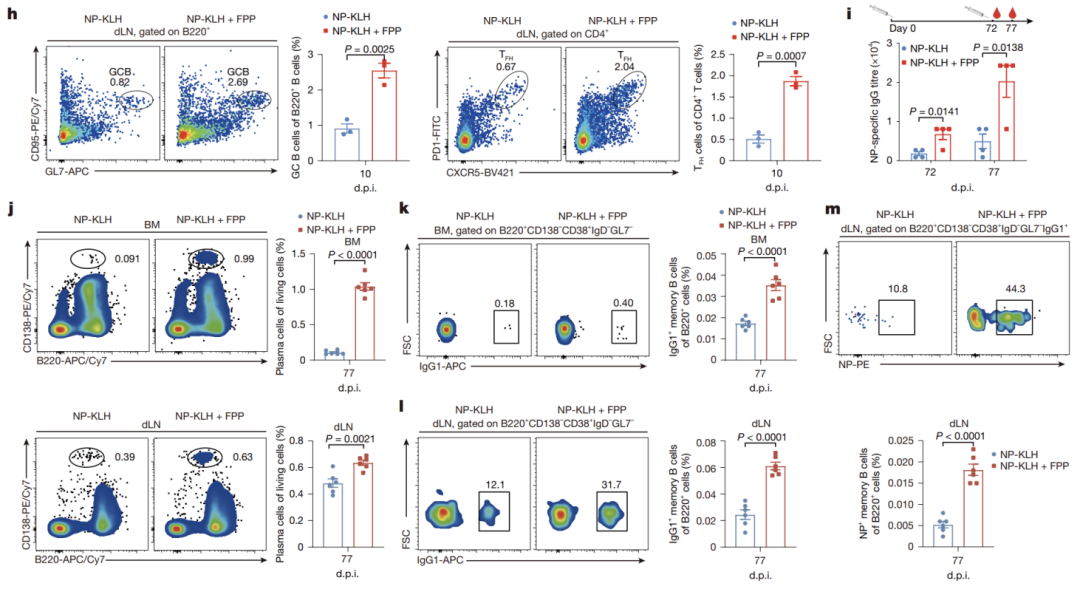
▲ 图1
▊▏02.FPP以急性和局部模式通过角质形成细胞IL-6和CCL20发挥作用
FPP的增强效应具有严格的时空特异性。当FPP在NP-KLH免疫前7天注射时效应消失;而在免疫前1小时或后1小时注射时,效应与同时注射相当,表明FPP作用具有急性时效性。UPLC-MS/MS证实FPP在注射后1小时内即被快速降解为法尼基单磷酸(FMP),而FMP不增强抗体应答。
空间上,FPP仅在与抗原同一部位注射时才有效;皮内注射效果优于肌内注射;腹腔或尾静脉注射无效,说明FPP需在皮肤内与特定细胞类型相遇。1小时内,FPP选择性上调CCL20、TNF、TSLP和FLT3L(促进DC招募和迁移)以及IL-6(促进Tfh分化)。这些“抗体促进因子”(APFs)在表皮中积累(而非真皮),3小时达峰。体外刺激实验确认角质形成细胞是FPP诱导IL-6和CCL20的主要来源。角质形成细胞特异性IL-6敲除小鼠证实FPP介导的抗体增强依赖于角质形成细胞来源的IL-6。CCL20通过招募CCR6⁺未成熟DC发挥作用,FPP增强该过程,抗CCL20抗体或CCR6缺失可阻断。FITC-OVA示踪显示FPP显著增强抗原阳性迁移性DC向dLN的迁移和成熟,主要为cDC2亚群。CCR7敲除小鼠中FPP的抗体增强效应降低约50%。
小结:FPP以急性、局部、皮内特异性方式发挥作用,通过角质形成细胞产生IL-6(促进Tfh)和CCL20(促进DC迁移)两条平行轴增强体液免疫。
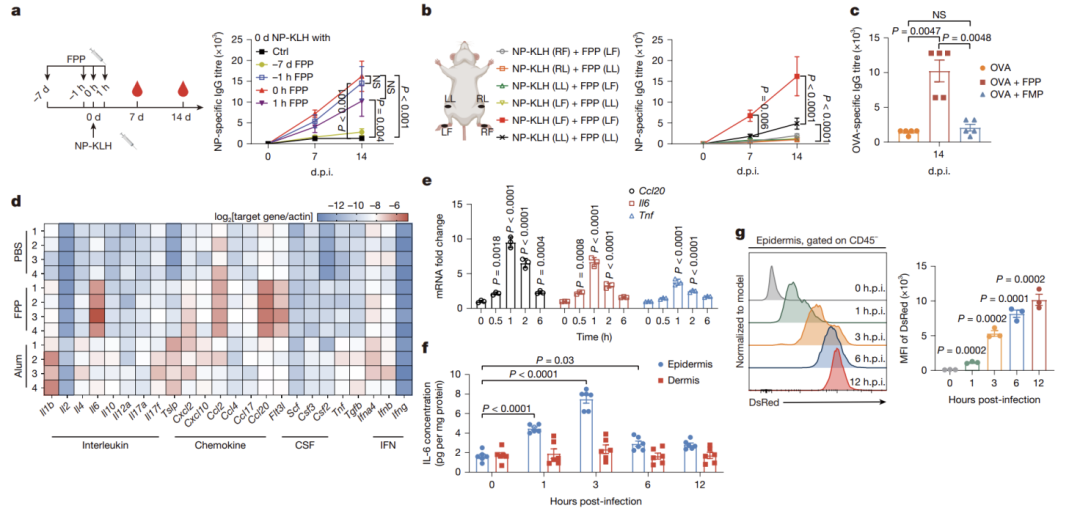
▲ 图2
▊▏03.角质形成细胞TRPV3介导FPP功能
FPP如何被角质形成细胞感知?电生理学证据表明,FPP特异性激活TRPV3(而非其他TRPV通道)。TRPV3在角质形成细胞中高表达,在免疫细胞中几乎不表达。TRPV3全敲除小鼠中FPP完全丧失抗体增强效应,但不影响免疫细胞发育和铝佐剂活性。TRPV3敲除角质形成细胞在FPP刺激后Ccl20和Il6不升高。骨髓嵌合体实验证实,FPP效应依赖于非免疫细胞(角质形成细胞)中的TRPV3而非免疫细胞中的TRPV3。角质形成细胞特异性TRPV3敲除(K5-cre;Trpv3^(fl/fl))小鼠同样消除了FPP的抗体增强效应。在TRPV3高表达的人表皮A431细胞中,FPP刺激诱导Ca²⁺内流和APF转录。TRPV3敲除A431细胞则无此反应(HaCaT细胞因缺乏TRPV3也无反应)。因此,FPP通过角质形成细胞TRPV3-[Ca²⁺]依赖方式促进APF产生。
小结:角质形成细胞TRPV3是FPP的功能受体,FPP通过TRPV3诱导钙内流和APF产生,从而增强体液免疫。
▊▏04.FPP通过结合TRPV3胞内结构域激活钙信号
分子对接预测FPP结合TRPV3的胞内结构域,关键相互作用通过Arg416和Lys581与FPP的焦磷酸头部形成盐桥和氢键。这一结合模式与PIP2结合TRPV5的结构相似。在表达钙传感器RCaMP的HEK293T细胞中,野生型TRPV3重建后FPP诱导[Ca²⁺]升高;而R416A、K581A单突变或双突变均无反应。这些突变体对已知TRPV3激动剂(香芹酚、樟脑)反应正常,说明突变特异性破坏FPP结合而不影响通道整体功能。TRPV3敲除A431细胞中重新表达野生型TRPV3可恢复FPP诱导的钙内流和细胞因子上调,突变型无效。FMP(仅一个磷酸基团)不能激活TRPV3或诱导细胞因子。通过抑制FPP下游酶GGPPS(TH-Z145)或FDFT(ZGA)使内源性FPP积累,也能剂量依赖性地诱导CCL20和IL-6表达,证明内源性FPP同样能激活该通路。感染后6小时皮肤病变中FPP积累达到约2 μg/mg蛋白,与外源注射浓度相当,且FPP主要积累于表皮活细胞中而非上清。
小结:FPP通过其焦磷酸头部与TRPV3胞内结构域的Arg416和Lys581结合,激活钙内流和下游信号。内源性积累的FPP同样能激活该通路。
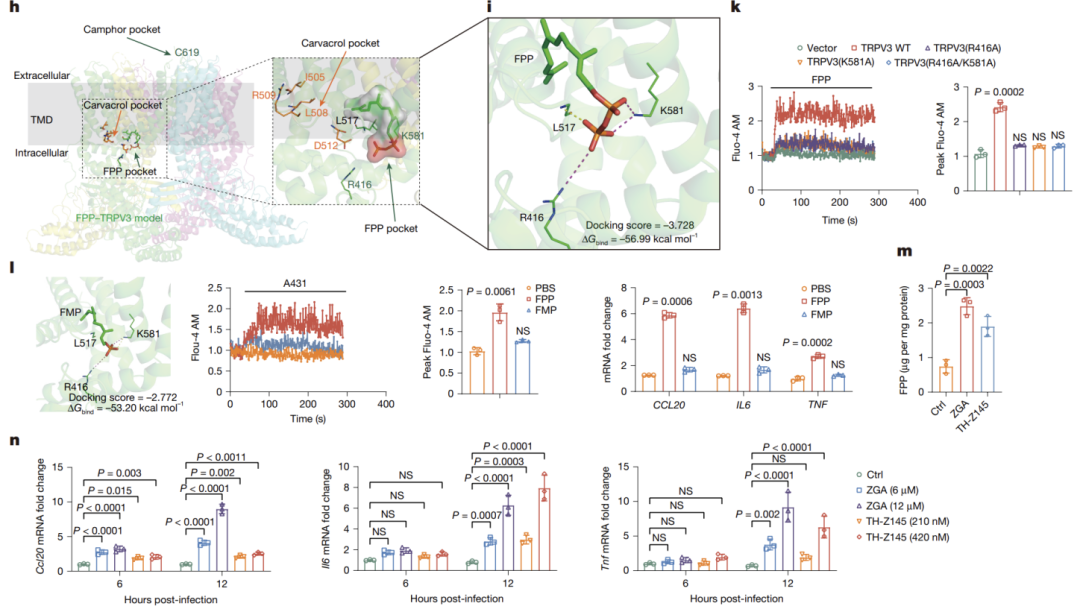
▲ 图3
▊▏05.UPR驱动角质形成细胞MVA通路激活与FPP积累
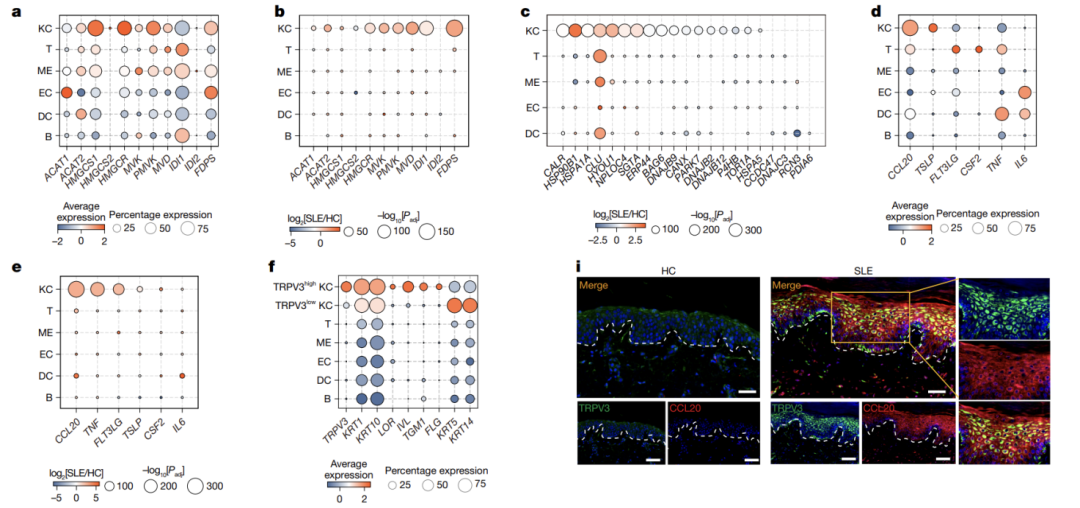
单细胞RNA测序显示,金黄色葡萄球菌感染皮肤中角质形成细胞是CCL20的主要来源(占98.66%),MVA通路主要在角质形成细胞中激活。角质形成细胞可分为TRPV3^high和TRPV3^low两个亚群。TRPV3^high亚群MVA通路激活更强、CCL20和GM-CSF表达更高,钙内流和APF诱导更强。分化成熟的角质形成细胞TRPV3表达远高于未分化细胞。感染如何上调MVA通路?UPR-PERK-eIF2α-INSIG1-SREBF轴驱动SREBF1/2核转位,激活Hmgcs1和Hmgcr转录。SREBF核转位抑制剂fatostatin可阻断这一过程。UPR诱导剂毒胡萝卜素(TG)可强效激活MVA通路;LPS、IMQ、CpG有微弱作用;IFN-I和IFN-III无效。eIF2α去磷酸化抑制剂salubrinal抑制MVA通路激活和FPP积累,并损害病原体特异性抗体应答。革兰氏阳性/阴性菌、牛痘病毒、HPV感染及UV照射均可激活MVA通路并积累FPP,但程度因细胞类型而异。
小结:感染通过UPR-PERK-eIF2α-INSIG1-SREBF轴激活角质形成细胞MVA通路,导致FPP积累。TRPV3^high角质形成细胞亚群对该通路激活最敏感。
▲ 图4
▊▏06.FPP-TRPV3轴增强抗感染免疫保护,SLE中过度激活
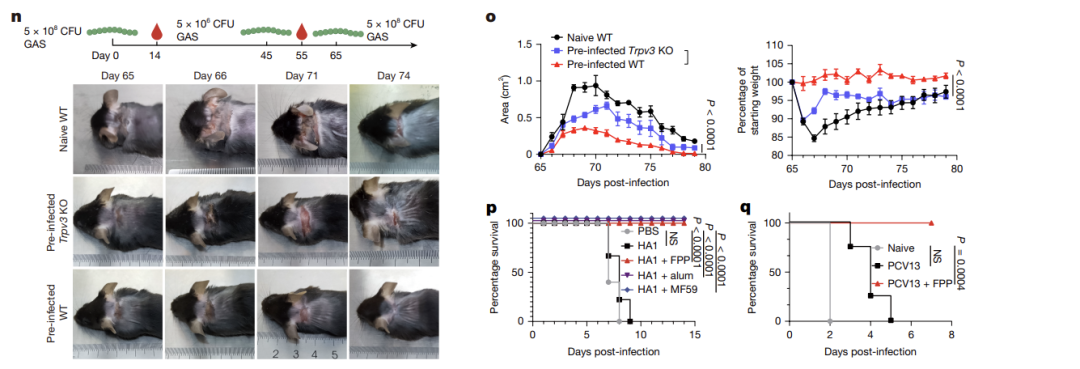
GAS感染后,TRPV3^(fl/fl);K5-cre cKO小鼠血清抗GAS IgG滴度低于对照,dLNs中淋巴细胞扩增、GC B细胞和Tfh细胞分化均显著减少,IgG1记忆B细胞减少约4倍。第45天低剂量GAS再次感染后,TRPV3-KO小鼠抗体滴度低约4倍,浆细胞和记忆B细胞减少。第65天高剂量GAS攻毒时,WT小鼠皮损更小、体重减轻更少。FPP与流感HA蛋白或PCV13共免疫可增强保护效果。SLE患者皮肤病变中常见金黄色葡萄球菌定植。分析SLE患者表皮scRNA-seq数据发现,角质形成细胞(尤其是TRPV3^high亚群)中UPR-MVA通路上调,APFs表达升高。免疫组化证实SLE患者表皮中TRPV3和CCL20共定位且表达升高,与CLASI评分正相关。在IMQ诱导和BM12转移狼疮模型中,皮肤定植金黄色葡萄球菌或FPP处理均促进抗dsDNA IgG产生和狼疮进展,且依赖于角质形成细胞TRPV3。
小结:FPP-TRPV3轴增强抗感染免疫保护,可作为疫苗佐剂;在SLE皮肤病变中该轴过度激活,通过TRPV3依赖性方式促进狼疮进展。
▲ 图5
研究小结
本研究首次鉴定了甲羟戊酸通路代谢中间产物FPP作为一种内源性代谢警报素,通过角质形成细胞TRPV3连接局部皮肤应激与系统性体液免疫。核心发现可归纳为:
FPP是MVA通路代谢物中唯一能增强T细胞依赖性抗体应答的分子,通过Tfh-GC轴发挥作用,具有免疫记忆增强功能。
FPP以急性、局部、皮内特异性方式发挥作用,在表皮角质形成细胞中诱导IL-6(促进Tfh)和CCL20(促进DC迁移)等APFs。
TRPV3是FPP的功能受体,FPP通过其焦磷酸头部与TRPV3胞内结构域的Arg416和Lys581结合,诱导Ca²⁺内流,激活CaM-钙调磷酸酶-NFAT和PYK2-RAS-ERK通路。
感染通过UPR-PERK-eIF2α-INSIG1-SREBF轴激活角质形成细胞MVA通路,导致FPP积累。TRPV3^high角质形成细胞亚群对该通路最敏感。
FPP-TRPV3轴增强抗感染免疫保护,可作为疫苗佐剂增强流感HA和PCV13疫苗效果。
SLE皮肤病变中该轴过度激活,金黄色葡萄球菌定植或FPP积累通过TRPV3依赖性方式促进狼疮进展。
该研究首次将角质形成细胞的代谢状态与系统性体液免疫直接联系起来,提出了“皮肤代谢警报素-系统性免疫增强”的新范式。从基础科学角度看,它揭示了MVA通路代谢物作为DAMPs的新功能;从转化角度看,FPP-TRPV3轴既可作为疫苗佐剂的靶点(增强保护性免疫),也可作为SLE等自身免疫病的治疗靶点(抑制过度激活)。从技术层面看,本研究整合了UPLC-MS/MS靶向代谢物定量、单细胞RNA测序、条件性基因敲除小鼠、分子对接与点突变验证、多种感染和自身免疫病模型,展示了代谢-免疫交叉研究的完整范式。
科似海:精准靶向代谢组学助力代谢警报素与体液免疫调控研究
本研究首次揭示了甲羟戊酸通路来源的FPP作为一种内源性代谢警报素,通过角质形成细胞TRPV3-Ca²⁺-IL-6/CCL20-Tfh轴增强系统性体液免疫的机制,证明皮肤代谢状态与系统性抗体应答之间存在直接联系。MVA通路代谢物(IPP、DMAPP、GPP、FPP、GGPP)及其磷酸化衍生物的精确定量,对分析平台的灵敏度和特异性提出了极高要求。科似海生物依托高灵敏度液质联用(LC-MS/MS)平台,建立了覆盖甲羟戊酸通路代谢物(IPP、DMAPP、GPP、FPP、GGPP)及其磷酸化衍生物的靶向精准定量检测体系,支持皮肤组织、角质形成细胞、血清等多种样本类型,实现低丰度代谢物的可靠检出。科似海代谢以精准检测技术,赋能代谢警报素研究及疫苗佐剂开发。
【参考文献】
Ji Z, Gao J, Zhang S, et al. A metabolic alarmin from keratinocytes potentiates systemic humoral immunity.Nature. 2026;652(8108):209-219. DOI: 10.1038/s41586-026-10167-6

公司公众号
企业微信
微信
咨询
售后
咨询
微信
公众号
 CN